Translate

lunedì 21 gennaio 2013

Uno stormo di raptor: volume due

L'ipotesi della "caccia in gruppo" per i Dromaeosauridi fu una costante durante gli anni '90, forte della presenza di reperti fossili di Tenontosaurus tillettorum (Ornithopode della massa di 1/2 tonnellate) associati a scheletri parziali e denti di Deinonychus antirrhopus, rinvenuti nella Cloverly Formation americana, ma subì una battuta d'arresto nel 2007 quando Roach e Brinkman, sulla base di studi tafonomici, rivalutarono tali reperti come il risultato di particolari condizioni di stress ambientale, in cui diversi predatori si accalcarono sulle carcasse degli ornitopodi, arrivando a combattere gli uni contro gli altri per l'acquisizione delle risorse e nutrendosi dei conspecifici morti durante la disputa (generalmente subadulti).Secondo i due paleontologi infatti i Dromaeosauridi non avrebbero avuto alcun comportamento sociale, ma anzi si sarebbero scannati a vicenda in preda a frenesia alimentare, comportamento studiato nei pesci ed in grossi rettili quali i Varani di Komodo.
Letto in un'ottica tipicamente aviana tuttavia questo dato non stona particolarmente in quanto anche all'interno dei pollai moderni esiste una rigida gerarchia, imposta attraverso "un'ordine di beccata", che stabilisce in maniera rigorosa quali esemplari possono nutrirsi per primi e quali devono attendere che i dominanti abbiano terminato il pasto prima di potersi nutrire.
Inoltre in un documento del 2008 redatto da Li et al. sono descritte piste di orme parallele attribuite a Deinonychosauri risalenti al Cretaceo inferiore e provenienti da Shandong, in Cina.
Tale scoperta potrebbe fornire la miglior prova del comportamento gregario in questi animali, ed il parallelismo delle orme potrebbe rafforzare la mia teoria secondo cui questi animali si muovessero ed eventualmente si nutrissero in stormo in maniera simile agli uccelli attuali, attuando forse gli stessi comportamenti di brutalità intraspecifica per stabilire una rigida gerarchia.

Sotto: Le impronte di Shandong (Li et al. 2008)

sabato 19 gennaio 2013

Uno stormo di raptor: volume uno

La rivoluzione Bakkeriana si originò dalla scoperta di un teropode relativamente piccolo ed agile, Deinonychus antirrhopus, avvenuta in nord America nel 1969 da parte di Ostrom.
La morfologia di quest'animale infatti cozzava contro l'i,mangime tradizionale dei dinosauri visti come lenti rettili a sangue freddo, ed aprì le porte alla formulazione della teoria dei dinosauri a sangue caldo.
Il cambiamento di paradigma che seguì alle rivoluzionarie teorie (e straordinarie scoperte)dei paleontologi, portò all'istituzione di nuove speculazioni riguardo l'etologia delle lucertole terribili, la maggior parte delle quali provenienti (a sproposito) dal mondo dei mammiferi.
Le più famose delle quali riguardano le cure parentali dei dinosauri e la loro "vita sociale", compresa l' idea della caccia della in branco.
- In questo post mi occuperò di quest'ultimo controverso aspetto.
In primis specifico che qualsiasi modello di caccia in gruppo basato su un branco di lupi o affini non potrebbe che avere esito fallimentare, in quanto come ho già puntualizzato i mammiferi sono filogeneticamente troppo lontani dai dinosauri per poter anche solo essere utilizzati riferimenti etologici.
Ancora una volta infatti ogni mia teoria o speculazione si baserà sul range comportamentale di uccelli ed arcosauri, molto più affini ai dinosauri teropodi e molto meno conosciuti dal grande pubblico.
Anche tra gli uccelli infatti esiste un alto grado di socialità, tanto che diversi generi istituiscono legami di coppia che durano anni o addirittura tutta la vita, motivo per cui molte specie di uccello sono considerate monogame, categoria a cui non appartiene nemmeno Homo sapiens.
1-Comincia a visualizzarsi una coppia di predatori eudromeosauridi in caccia.
Un altro fenomeno tipicamente aviano è lo stormo, termine che si riferisce ad un gruppo di uccelli che si riuniscono assieme durante il volo o mentre si nutrono.
Durante il volo in stormo migliaia di uccelli riescono  coordinarsi perfettamente eseguendo manovre aeree chirurgiche istintivamente, basandosi sul movimento degli uccelli vicini o del capogruppo, ossia il primo uccello dello stormo.
Qualcuno potrà obiettare che gli uccelli carnivori, come i rapaci, non cacciano in stormi e che quindi la mia idea di uno stormo di eudromeosauridi è troppo speculativa, eppure ciò è vero solo in parte, infatti Parabuteo unicinctus, la Poiana di Harris, è l'unico caso documentato di rapace in grado di cacciare in stormo, tanto che durante la caccia, che guarda caso avviene in coppia o in gruppi poco numerosi, alcuni esemplari arrivano a scendere a terra per stanare le prede, permettendo agli esemplari in volo di ghermirle.
2-Alla caccia della coppia di "raptor" si aggiunge un terzo individuo, un probabile subadulto non più costretto nel nido, che ha il compito di stanare eventuali prede permettendo agli adulti di coordinarsi per abbatterla, non tramite vocalizzazioni complesse o comunicazione ma grazie alla "mentalità di stormo".

Sotto:Uno stormo di Deinonychus antirrhopus a caccia da "Don't mess with dinosaurs"

mercoledì 16 gennaio 2013

La guerra passeriforme

Le relazioni filogeneniche tra dinosauri e uccelli sono ormai note  ai più, tanto che a volte la parola "dinosauro" viene usata a sproposito per indicare animali come passer domesticus o affini che sarebbe meglio nominare neorniti o uccelli.
Ciononostante anche questi piccoli animali che vivono quotidianamente affianco a noi possono insegnarci molto riguardo all'etologia dei dinosauri, un ambito di difficile ricostruzione e probabilmente perso nella sua interezza.
Infatti i passerotti, come tutti i passeriformi, sono strenui combattenti, che non esitano a lanciarsi in scontri cruenti per la conquista di potenziali compagne o il possesso di risorse alimentari.
Chiunque ha una certa esperienza nell'ambito dell'osservazione naturalistica avrà notato come questi piccoli neorniti combattano fino alla fine arrivando a precipitarsi giù da tetti o da rami.
La tecnica di combattimento dei passeriformi sfrutta appieno tutte le armi di questi piccoli animali:
L'attacco inizia in volo, con i passeri che si scagliano l'uno contro l'altro con gli artigli protesi verso il rivale, successivamente a l primo impatto i combattenti spesso cadono al suolo dove lo scontro continua a colpi di artigli e beccate e gli animali assumono una posa particolare.
Uno dei due rivali è in piedi, mentre il secondo si trova supino, ai piedi di esso, ma le sorti della battaglia sono lungi dall'essere decise.
Il passero schienato infatti non risulta sottomesso, ma si trova nella posizione ottimale per sfruttare i suoi arti artigliati (gioco di parole), direzionando i colpi al petto, al collo ed agli occhi dell'avversario che invece avrà meno possibilità di colpire.
Questo particolare schema d'attacco ci ricorda qualcosa?
Magari un fossile rinvenuto nel 1971 in Mongolia e battezzato appunto "dinosauri combattenti", in cui un Velociraptor ed un Protoceratops sono avvinghiati in uno scontro all'ultimo sangue, ed in cui il predatore schienato colpisce con il formidabile artiglio a falcetto il collo della preda, mentre quest'ultima morde l'ala* dell'aggressore in un disperato tentativo di difendersi.
Non male per un passerotto!

*-Nessuno si azzardi a pensare ad un Velociraptor mongoliensis volante, il termine ala si riferisce all'avambraccio del predatore dotato di 14 penne remiganti secondarie Turner et al.(2007)

Sotto- I "dinosauri combattenti".

lunedì 14 gennaio 2013

When Ceratopsian ruled!

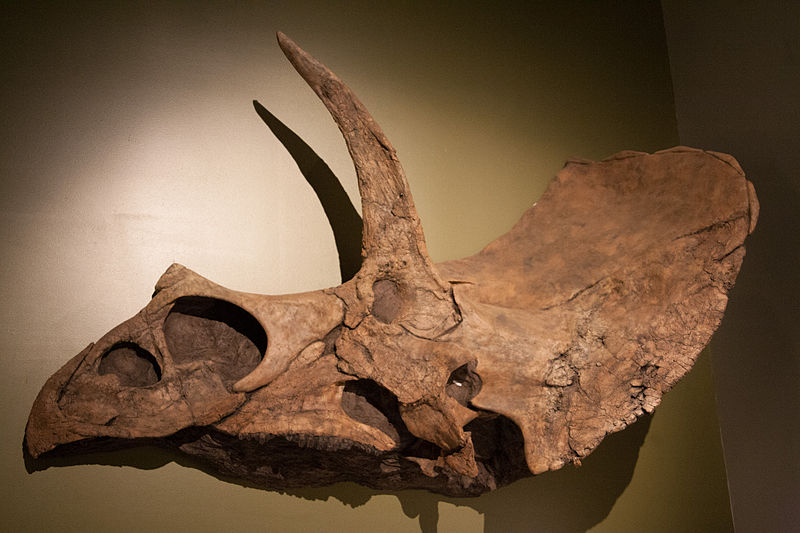
Triceratops serratus, T.calicornis, T.flabellatus, T.eurycephalus, T.elatus sono solo alcuni nomi attribuiti ai molti fossili di Ceratopsidi rinvenuti in nord America nell'ultimo secolo.
Infatti durante la sua storia tassonomica il genere Triceratops ha vantato una fioritura di oltre quattordici specie, oggi ridotte a due universalmente ritenute valide, Triceratops horridus, la specie tipo descritta da Marsh nel 1889, e Triceratops prorsus descritta dallo stesso Marsh l'anno successivo, il quale presenta un corno nasale più prominente ed orientato in avanti verso il becco piuttosto che verso l'alto come avviene nella specie tipo (dal latino prorsus=dritto).
Le restanti dodici specie sono ormai considerate nomina dubia, ed il più delle volte erano state istituite sulla base di campioni incompleti o deformati dal tempo, come nel caso di T.brevicornis nominato a partire da un cranio avente un ridotto corno nasale che successivamente si scoprì essere spezzato, invalidando l'istituzione della specie.
Le classificazioni errate o dubbie però non sono un male debellato, anzi sono una costante della paleontologia che spesso affligge i Ceratopsidi in quanto diagnosticabili solo in relazione ad alcune caratteristiche craniche.
"Ugrosaurus " olsoni ad esempio è il nome dato da Cobabe e Fastovsky nel 1987 ad UCMP 128561, un campione frammentario proveniente dagli Stati Uniti attribuibile ad un grosso ceratopside vissuto nel tardo Cretaceo.
Il reperto, formato da parte del becco e da frammenti della parte anteriore del cranio non presenta un vero e proprio corno nasale ma una sorta di ispessimento osseo simile a quanto di osserva in un altro ceratopside simpatrico, Nedoceratops.
Secondo altri studiosi (e per quanto vale anche secondo il sottoscritto) il corno nasale risulterebbe essere scheggiato, e quindi sulla base del luogo di ritrovamento, dell'epoca del reperto e delle dimensioni dello stesso, UCMP 128561 dovrebbe essere attribuito a Triceratops horridus.
Vi è poi il caso di RTMP 2002.57.5, un altro ceratopside gigante del tardo Cretaceo vissuto 70/68 milioni di anni fa nell'attuale Alberta e battezzato nel 2007 Eotriceratops xerinsularis da Xu et al.
Dallo scheletro incompleto e disarticolato di Eotriceratops appare chiaro che l'animale era enorme, tanto che il solo cranio sfiora i tre metri, e strettamente imparentato con Triceratops.
E.xerinsularis infatti è stato descritto dai suoi scopritori come il diretto antenato di Triceratops, addirittura di dimensione maggiori di quest'ultimo.
Eppure anche in questo caso l'istituzione di tale genere e specie non risulta pienamente convincente.
I caratteri diagnostici per Eotriceratops infatti risultano:
-Ossa jugali molto pronunciate
-Alto processo premascellare che giunge a toccare le ossa nasali
-Ossa epoccipitali della gorgiera allungate ed appiattite
(La zona postcraniale non presenta alcun carattere diagnostico, come avviene per la maggior parte dei ceratopsidi).
Tali caratteristiche non escludono categoricamente l'appartenenza di RTMP 2002.57.5 a Triceratops horridus, in quanto alcuni esemplari ritenuti appartenenti a questa specie presentano ossa epoccipitali del collare appiattite e processi premascellari alti pur non quanto Eotriceratops, ma ciò potrebbe rientrare nel range di differenze intraspecifiche tipiche della specie, oppure essere indicativo dell'età avanzata degli individui come suggerito dalle dimensioni degli esemplari.
In Eotriceratops inoltre le corna sopra orbitali presentano una curvatura simile a quella diagnostica della specie tipo di Triceratops,ed il corno nasale risulta relativamente piccolo ed orientato verso l'alto, indicando una relazione più forte tra esso e T.horridus rispetto a T.prorsus.
La datazione del fossile infine è interessante, in quanto potrebbe indicare che la specie T.horridus visse per circa quattro milioni di anni, un lasso di tempo lunghissimo ma giustificato dal successo della specie, la più evoluta all'interno della famiglia dei Ceratopsidi.

Sopra-Cranio di RTMP 2002.57.5
Sotto-Triceratops horridus

sabato 12 gennaio 2013

Il 2012 del re(x)

L'anno appena trascorso è stato ricco di "rivelazioni" inerenti ad una delle specie di teropodi meglio conosciute, Tyrannosaurus rex. L'anno si è aperto con titoli come <> che si riferivano ad uno studio condotto negli ultimi mesi del 2011 da un team di paleontologi capitanati da John R. Hutchinson, che dopo aver creato un modello computerizzato di Tyrannosaurus rex sulla base di scansioni laser eseguite sui cinque scheletri meglio conservati della specie, tra cui FMNH PR 2081 (per gli amici Sue), sono giunti alla conclusione che in vita gli esemplari adulti pesassero tra le 7 e le 9 tonnellate, una misura che supera quasi del 30% le stime precedenti, e che ha portato Hutchinson ad ipotizzare per i giovani T.rex un ritmo di crescita di circa una tonnellata e mezza all'anno (la paleoecologia e paleobiologia dei giovani di Tyrannosaurus saranno oggetto di un mio futuro post). A Febbraio Bates e Falkingham mostrarono al mondo la forza del morso del "re dei dinosauri" attraverso un modello dinamico muscoloscheletrico che indicò per i denti posteriori di Tyrannosaurus una forza compresa tra i 35000 ed i 57000 newton, ossia una forza peso pari a 5 tonnellate. Inoltre verso la fine dell'anno una chicca riguardo l'ecologia di Tyrannosaurus'ed il suo modo di nutrirsi descritta qui (http://lucertoleterribili.blogspot.it/2012/12/decapitazione-ceratopside.html). Insomma un anno degno del re(x)!

venerdì 11 gennaio 2013

Primo piano di una star! Spinosaurus aegyptiacus

L'avvento del terzo capitolo della saga di Jurassic Park nel 2001 ha proiettato Spinosaurus, seppur tra luci ed ombre, sull'Olimpo dei dinosauri, trasformando questa creatura poco conosciuta in una celeberrima star.
A dispetto della fama però i resti di Spinosaurus non abbondano di certo, anzi, l'olotipo descritto da Stromer nel 1915 sulla base di un cranio parziale ed alcune vertebre dotate di spine neurali lunghissime (quasi 2 m.), è andato perduto durante i bombardamenti su Berlino nella seconda guerra mondiale, e quello che ci resta oggi sono dei rostri provenienti dalle maggiori formazioni nordafricane.
Uno dei meglio conservati fu ritrovato nel 1975 tra le sabbie della formazione Kem Kem, ed acquistato nel 2002 dal museo di storia naturale di Milano dove è a tutt'oggi esposto.
Il reperto è stato attentamente studiato dai paleontologi Cristiano Dal Sasso e Simone Maganuco, nel 2006, e da tale studio è emersa la paleoecologia di Spinosaurus.
Il rostro infatti, presenta forti somiglianze con il muso del gaviale (coccodrillo moderno specializzato nella cattura del pesce caratterizzato da un apparato buccale estremamente allungato), denti conici privi di seghettatura, ideali per trattenere prede viscide e sfuggenti, e diversi fori all'apice del muso, probabili recettori sensoriali utili per "avvertire" lo spostamento d'onda provocato dal movimento dei pesci, permettendo così all'animale di catturare le prede anche in acque torbide.
Tale adattamento infatti è presente anche nei coccodrilli, che possiedono all'apice del muso una serie di forellini innervati dal nervo trigemino che consentono ai rettili di cacciare senza l'ausilio della vista.
Dal rostro conservato al museo di Milano emerge anche un'altra peculiarità anatomica dello Spinosaurus, questa volta affine agli uccelli pescatori come gli aironi, ossia la posizione arretrata delle narici, che permettevano all'animale di respirare anche con buona parte del muso immerso nell'acqua.
Sulla base del campione milanese i due paleontologi hanno anche provato a stimare le dimensioni dell'animale, giungendo ad una lunghezza di quasi 17 metri per nove tonnellate di peso.
Io dissento fortemente da tale estrapolazione, proponendo una lunghezza compresa tra i 12,3 ed i 14,4 metri e le 4/6 tonnellate di peso(dati basati su Baryonyx walkeri e Suchomimus tenerensis, spinosauridi filogeneticamente affini a Spinosaurus aegyptiacus, e rafforzatisi durante l'ultimo anno) conscio che in mancanza di reperti più completo ogni stima effettuata lascia il tempo che trova.
Sotto: Il rostro esposto al museo di storia naturale di Milano

mercoledì 9 gennaio 2013

Signore e signori, l' Arcivescovo !

I letti di Tendaguru, in Tanzania, hanno restituito i reperti più completi di sauropodi giganti, classificati come appartenenti a Brachiosaurus (=Giraffatitan ) brancai.
Anche quando nel 1930 il paleontologo inglese Frederick Migeod rinvenne in loco un esemplare frammentario di sauropode, campione  BMNH R5937, esso fu classificato come appartenente alla specie B.brancai, nonostante nell'unica pubblicazione scientifica scritta riguardo all'esemplare, redatta dallo stesso Migeod nel 1931, venga messo in luce come BMNH R5937 possieda spine neurali bifide, come Diplodocus, mentre Brachiosaurus e affini presentano strutture vertebrali singole, prive di biforcazione.
Nonostante ciò il campione rimase etichettato al British Museum of Natural History come appartenente a Brachiosaurus finché nel 2005 Michael P. Taylor, dopo aver rivalutato i reperti concluse che BMNN R5937 non sia attribuibile a Brachiosaurus/ Giraffatiitan e lo riclassificò come  brachiosauride indeterminato.
Sulla base di quanto emerge da Taylor (2005) l'esemplare possiede diverse lamine paraspinali non riscontrate in Brachiosaurus, spine neurali bifide,come già evidenziato da Migeod, e vertebre cervicali proporzionalmente più lunghe di quest'ultimo, che possono indicare che il collo dell'animale fosse ancora più lungo rispetto a Brachiosaurus sp.
L'esemplare non presenta ancora un nome scientifico, ed è solitamente nominato "The Archbishop" e sarà presto oggetto di un' ulteriore revisione ad opera dello stesso Taylor.

NdT- È particolarmente interessante notare come negli stessi luoghi che hanno restituito le due specie note di Brachiosaurus siano stati ritrovati brachiosauridi ancor più giganteschi e dotati di un collo proporzionalmente più lungo.
Sarebbe interessante provare ad individuare alcune sinapomorfie tra Sauropseidon proteles e "the Archbishop".... Ma questa è un'altra storia.

Sotto- La straordinaria restaurazione in vita dell'animale realizzata dal blogger e paleoartista Nima.